 2023, Vol. 44


2. 国家耐盐碱水稻技术创新中心 华南中心, 广东 湛江 524088;
3. 广东海洋大学 滨海农业学院, 广东 湛江 524088;
4. 岭南师范学院 生命科学与技术学院, 广东 湛江 524048
2. South China Branch, National Saline-Alkali Tolerant Rice Technology Innovation Center, Zhanjiang 524088, China;
3. College of Coastal Agricultural Science, Guangdong Ocean University, Zhanjiang 524088, China;
4. Life Science and Technology School, Lingnan Normal University, Zhanjiang 524048, China
MADS是一类重要的转录因子,其命名来源于酿酒酵母的Mini chromosome maintenance 1(MCM1)、拟南芥AGAMOUS(AG)、金鱼草DEFICIENS(DEF)和人类Serum response factor(SRF)基因,它们所编码蛋白的N端都含有由50~60个氨基酸组成的MADS-box保守结构域[1]。植物MADS家族从系统发育上可分为I型和II型(又称MIKC型)2种,二者的区别主要在于有无K-box结构域[2-3]。关于I型MADS基因家族成员的报道较少。在水稻中,I型的OsMADS78和OsMADS79在种子发育早期发挥了重要的调控作用[4];拟南芥中研究比较深入的I型MADS是AtAGL62,参与调控拟南芥胚乳发育过程中的细胞分化[5]。II型MADS基因是植物所特有的,也是目前研究最多的,其中被广泛熟知的是参与花器官的形成和发育,如经典的花器官发育模型“ABC(D)E模型”中控制花萼和花瓣形成的AP1、控制花瓣和雄蕊形成的AP3、控制雄蕊和心皮形成的AG等基因,均属于MADS家族成员[3]。除了参与调控开花,MADS基因还被报道参与植物多种生长发育过程。水稻的OsMADS25通过正调控生长素的累积参与促进主根和侧根的生长[6];豆科作物大豆Glycine max的MADS成员GmNMH7能够抑制结瘤相关基因的表达,进而在根瘤的形成和发育过程中扮演负调控角色[7]。MADS家族基因还参与植物应对非生物胁迫的适应性调控[8]。拟南芥AtAGL6通过抑制盐胁迫响应基因的表达,负调控植物耐盐[9];水稻OsMADS25响应ABA信号,正调控植株对低温的适应性[10];超量表达野生大豆MADS基因GsMAS1,增加了拟南芥对铝毒的耐受性[11]。此外,多个MADS基因被报道参与缺磷的响应,如水稻的OsMADS23、OsMADS25和OsMADS27[12],但具体分子功能还有待进一步研究。
大豆是我国重要的粮油作物,然而我国大豆生产严重不足,每年约1亿吨需要进口[13]。限制大豆生产的因素很多,其中,磷作为植物生长必需的大量营养元素,在土壤中很容易被吸附固定,导致土壤有效磷含量普遍偏低,低磷胁迫是限制我国大豆生长和产量的重要因素之一[14-15]。研究大豆磷营养调控机理,挖掘调控大豆适应低磷胁迫的重要转录因子,对于磷高效大豆品种的遗传改良和培育具有重要意义[15-16]。MADS家族转录因子在大豆全基因组共有163个成员[17],但是目前有功能报道尤其是有响应低磷胁迫功能的相对较少。本研究克隆了1个大豆II型MADS成员——GmMADS4,并通过生物信息学、亚细胞定位、表达模式分析以及超量表达该基因对根系磷稳态的影响分析,进一步挖掘该基因可能的功能,为深入解析GmMADS4在大豆生长发育以及低磷胁迫适应过程中的功能奠定基础。
1 材料与方法 1.1 供试材料本研究所用植物材料为大豆品种‘粤春03-3’,由华南农业大学根系生物学研究中心惠赠;烟草Nicotiana benthamiana为本氏烟草。所用菌株为大肠埃希菌DH5α、根癌农杆菌GV3101、发根农杆菌K599。
1.2 试验处理及样品准备不同组织部位表达模式及缺素处理表达模式分析参考Yao等[18]的方法。挑选大小一致的大豆种子,播种于砂土中进行萌发,5 d后选择长势一致的幼苗,转移到1/2 Hoagland正常营养液中进行培养。对于不同组织部位样品,分别在培养的第32天(大豆开花时)收获根、茎、叶、花,第50天收获种子。对于缺素处理样品,幼苗在正常营养液培养1周后,取部分幼苗分别转移到无氮、无磷、无钾的1/2 Hoagland营养液(北京酷来搏公司)中处理24 h,然后收获根和新叶以备分析。试验于2021年4—6月在日光温室进行,白天平均气温30 ℃,夜晚平均气温25 ℃,日平均光照时间为13 h。收获后的样品立即用液氮冷冻,之后放入−80 ℃条件下保存,用于RNA提取。
用Trizol试剂(Invitrogen公司)分别提取根、茎、叶、花和种子的总RNA,具体方法参照其说明书中的步骤。测定提取的总RNA的浓度和纯度,检测合格后,取1 μL的总RNA,根据逆转录试剂盒(Promega公司)说明书去除基因组DNA后进行逆转录反应,获得相应的cDNA,保存于−20 ℃,作为载体构建和RT-qPCR的模板。
1.3 生物信息学分析GmMADS4基因基本信息包括开放阅读框(Open reading frame, ORF)长度、外显子/内含子数目、氨基酸长度,从Phytozome数据库( https://phytozome-next.jgi.doe.gov/)获得。GmMADS4蛋白相对分子质量及等电点通过Expasy数据库( https://web.expasy.org/compute_pi/)获得。GmMADS4蛋白保守结构域的预测通过NCBI conserved domains ( https://www.ncbi.nlm.nih.gov/Structure/cdd/wrpsb.cgi)进行。基因结构通过GSDS网站( http://gsds.gao-lab.org/index.php)获得。蛋白二级结构通过Prabi网站( https://npsa-prabi.ibcp.fr/cgi-bin/npsa_automat.pl?page=npsa_sopma.html)进行预测。GmMADS4基因启动子(5′ UTR上游2 000 bp的DNA序列)顺式作用元件预测通过PlantCARE网站( http://bioinformatics.psb.ugent.be/webtools/plantcare/html/)进行。GmMADS4互作蛋白预测通过STRING网站( https://www.string-db.org/)根据氨基酸序列进行。系统进化树分析通过MEGA 5.05软件完成,采用邻接法(Neighbor-joining method),Bootstrap设置为1 000次。
1.4 载体构建以大豆花的cDNA为模板,用基因特异引物(OE-GmMADS4-F/R)对GmMADS4基因ORF全长进行PCR扩增。50 μL的PCR反应体系:10× Ex Taq Buffer 5 μL、dNTP 4 μL、正反向引物各1 μL、cDNA模板2 μL以及ddH2O 37 μL。PCR反应程序:94 ℃预变性3 min;94 ℃变性30 s、59 ℃退火30 s、72 ℃延伸1 min,30个循环;72 ℃保温10 min。扩增出的目标基因片段纯化回收后,先连入pMD18-T载体,经测序无误后,用Sac I和Xba I进行双酶切,再通过T4 DNA连接酶将GmMADS4基因连入目标载体pTF101s,获得GmMADS4-pTF01s重组质粒,检测无误后转入发根农杆菌K599备用。
构建GmMADS4融合绿色荧光蛋白(GFP)的表达载体,用基因特异引物GFP-GmMADS4-F/R(酶切位点为Kpn I和BamH I)扩增GmMADS4基因ORF全长,并连入目标载体pBEGFP,测序无误后转化农杆菌GV3101备用。引物设计通过PerlPrimer软件完成,引物序列见表1。

|
表 1 本研究所用到的引物 Table 1 Primers used in this study |
GmMADS4蛋白亚细胞定位通过烟草叶片表皮细胞瞬时表达[19]进行分析。将含有GmMADS4-pBEGFP载体质粒的农杆菌GV3101活化后扩大培养,菌体收集后用重悬液(包含10 mmol/L MgCl2、10 mmol/L MES以及0.1 mmol/L 乙酰丁香酮)重悬,使D600 nm为0.5左右,静置2~3 h,通过注射器导入生长3~4周的烟草叶片下表皮,转化3 d后即可进行观察。以转化空载体pBEGFP的叶片为对照。GFP荧光的观察通过激光共聚焦显微镜进行,激发光波长为488 nm,发射光波长为507 nm。
1.6 RT-qPCR分析将大豆待测cDNA样品稀释10倍作为模板,RT-qPCR参考Liu等[20]的方法,试剂采用Go Taq qPCR Master Mix(Promega,美国),通过StepOnePlusTM实时荧光定量PCR仪(ABI,美国)完成,程序设置为95 ℃ 30 s;95 ℃ 5 s、60 ℃ 15 s,40个循环;72 ℃ 30 s。基因定量引物RT-GmMADS4-F/R和内参基因GmEF-1α (Glyma17g23900)定量引物RT-GmEF-1α-F/R见表1。目的基因的相对表达量用2-ΔΔCt法计算。
1.7 大豆复合植株转化大豆复合植株转化参考Zhuang等[21]的方法。种子萌发后,用注射器的针头分别蘸取适量携带pTF101s空载体和GmMADS4-pTF101s的K599发根农杆菌,然后在大豆幼苗子叶节的位置穿孔并涂抹菌体,进行侵染。约10 d左右可以看到有毛根长出,待毛根长到10 cm左右,把原来的主根剪掉,留下毛根,即为转基因复合植株。将超量表达GmMADS4和对照转基因复合植株转移到正常营养液中培养2周,收获地上部和毛根进行相关指标的测定。
1.8 生物量的测定植株生物量用干质量表示,样品收获后立即在105 ℃烘箱杀青30 min,然后调到75 ℃烘干至恒质量,称取植株总干质量;每个处理有4次独立的生物学重复。
1.9 可溶性磷含量的测定将0.1 g毛根用液氮速冻并研磨至粉碎,加1 200 µL双蒸水继续研磨以充分提取毛根中的可溶性磷;将研磨混合液转入2 mL离心管,于4 ℃、14 000 r/min离心30 min;取上清液采用钼锑抗比色法[22]测定磷含量,测定波长为700 nm。
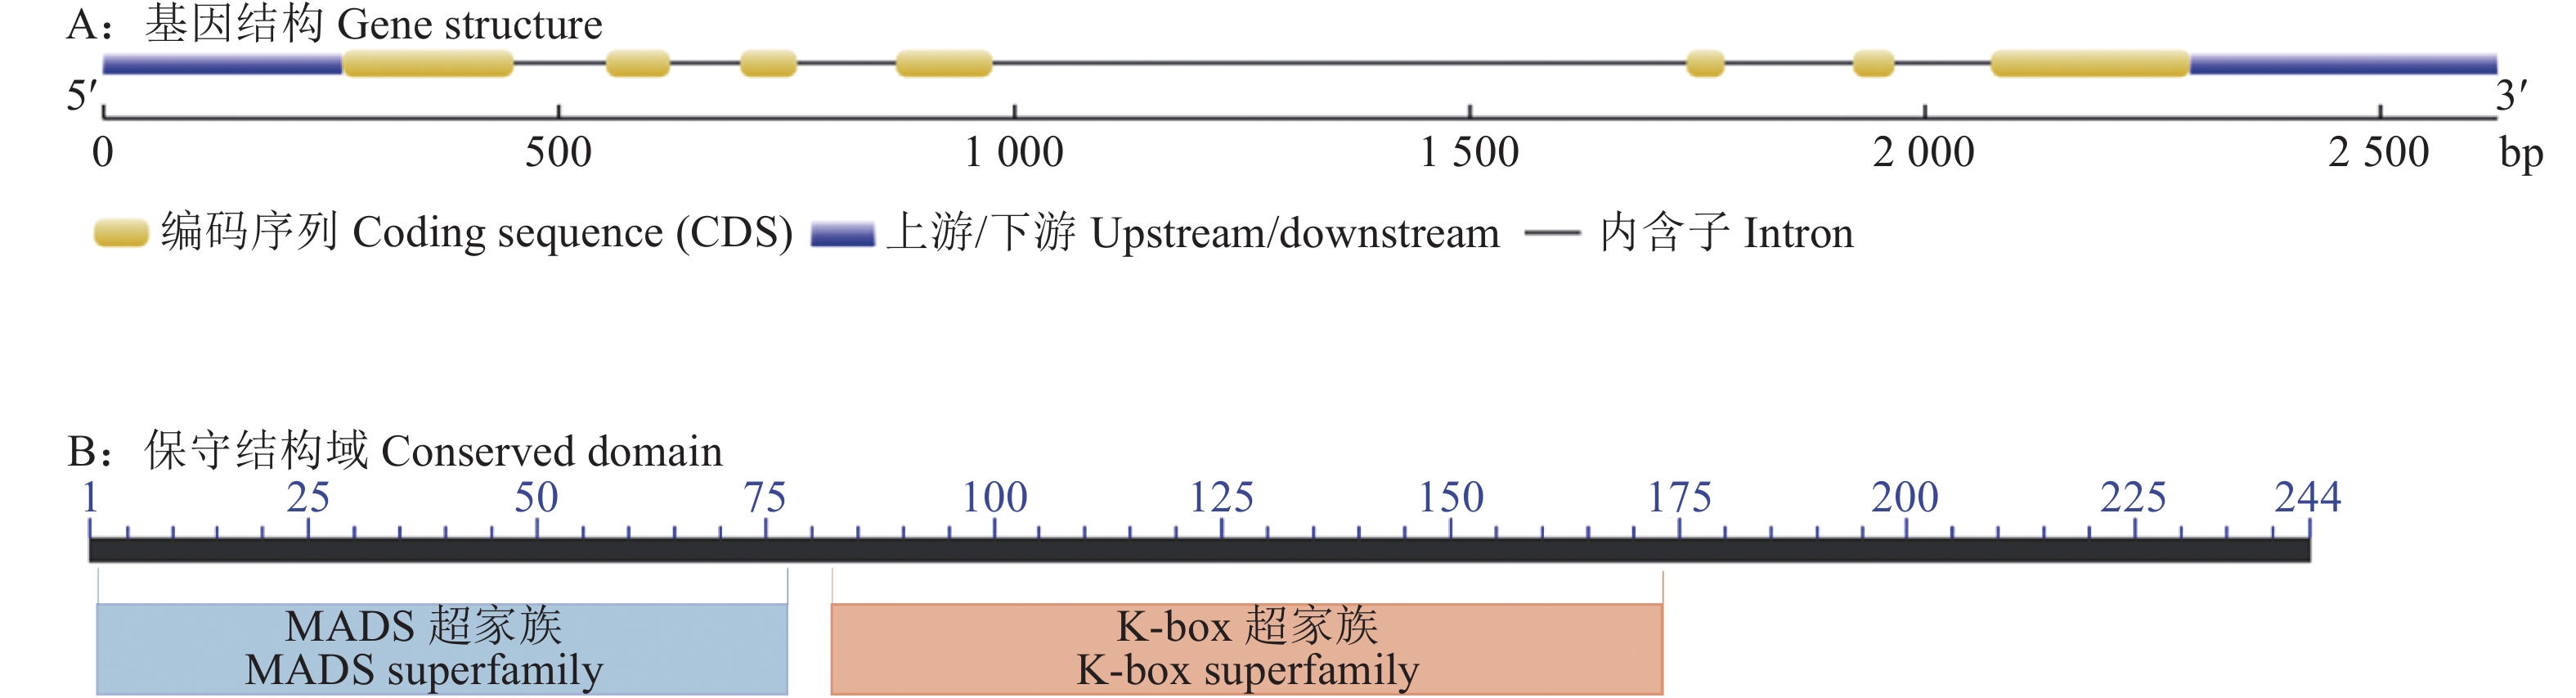
2 结果与分析 2.1 GmMADS4基因结构及保守结构域预测随着基因组数据库的更新,本研究获得了1个大豆MADS成员,基因座位号为Glyma01g37470,命名为GmMADS4,该基因ORF长度为732 bp,编码244个氨基酸,预测蛋白相对分子质量为28 000,等电点为9.31。GmMADS4基因结构如图1A所示,该基因由7个外显子和6个内含子组成,两端各有1段非编码区。通过NCBI conserved domains保守结构域预测网站分析GmMADS4蛋白保守结构域,结果表明,该基因编码蛋白N端第2—77个氨基酸,为保守的MADS结构域,说明该基因属于MADS超家族,此外还含有1个K-box结构域(图1B)。
|
图 1 GmMADS4基因结构及保守结构域预测 Fig. 1 Gene structure and conserved domain prediction of GmMADS4 |
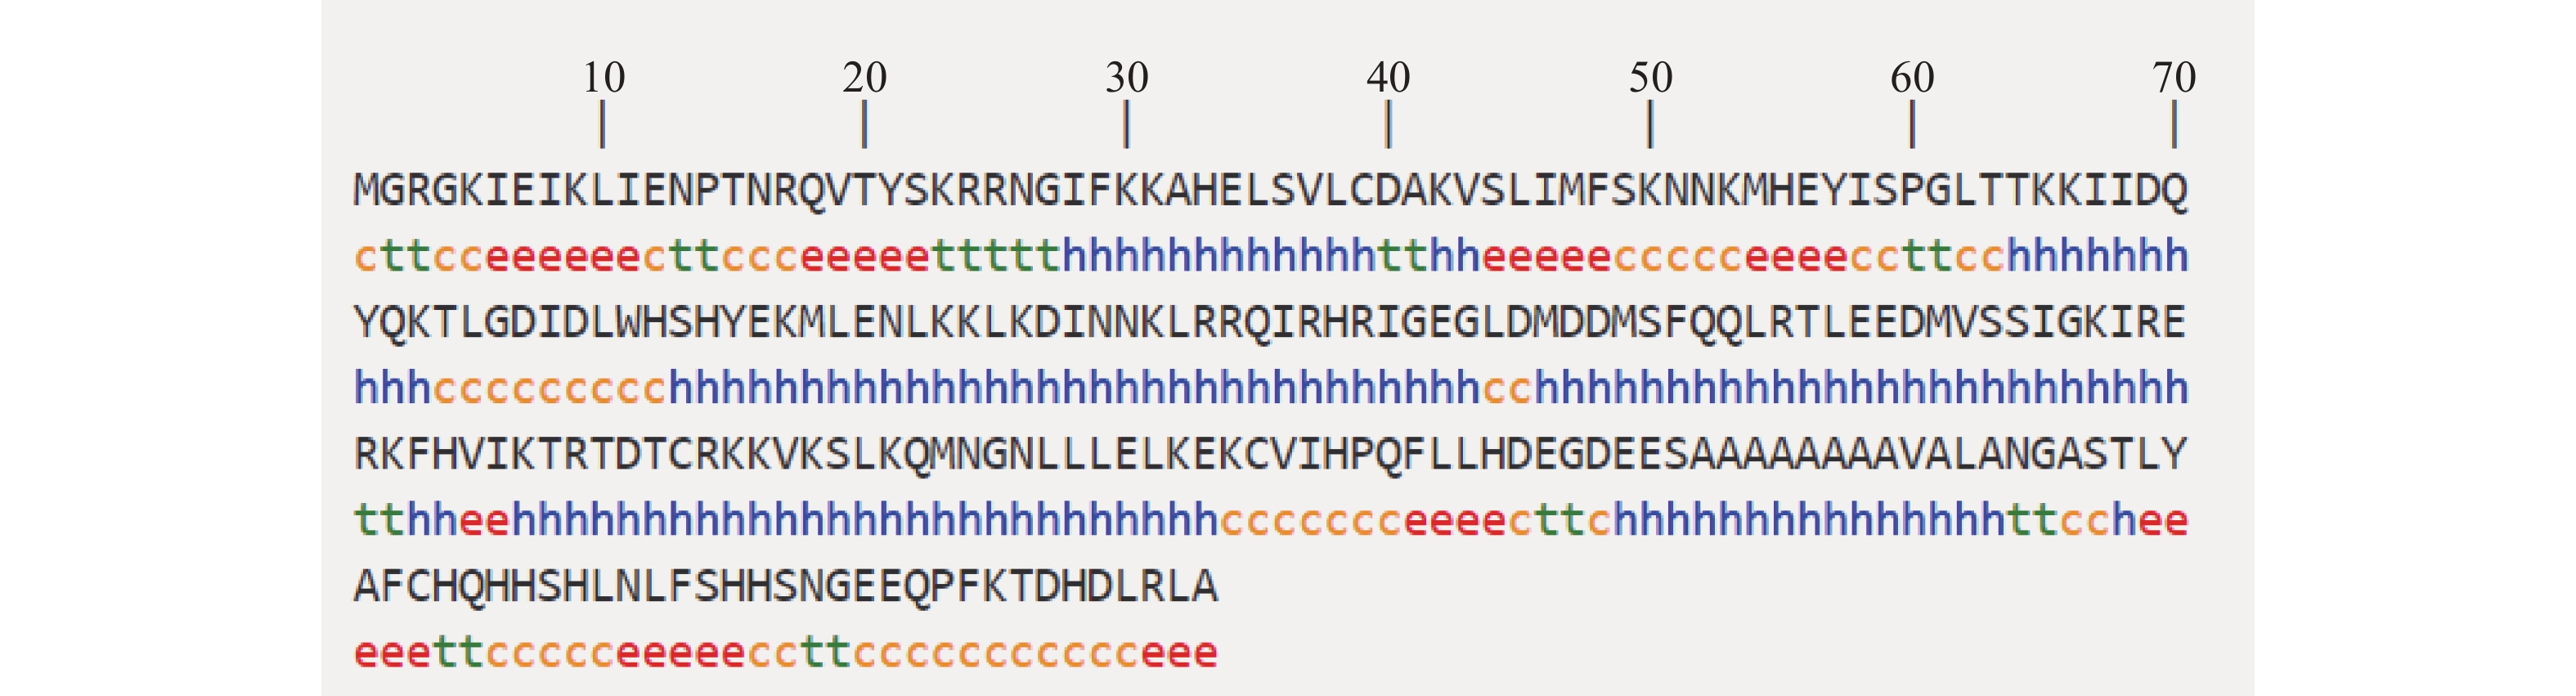
进一步分析了GmMADS4蛋白二级结构,结构表明GmMADS4蛋白包含多个α螺旋、β转角、延伸链和无规则卷曲(图2)。其中,α螺旋最多,占51.44%;其次为无规则卷曲,占23.05%;延伸链占16.05%;β转角最少,占9.47%(图2)。
|
图 2 GmMADS4蛋白二级结构预测 Fig. 2 Secondary structure prediction of GmMADS4 大写字母表示GmMADS4蛋白氨基酸序列;小写字母代表不同的二级结构,h代表α螺旋,c代表无规则卷曲,e代表延伸链,t代表β转角 Capital letters indicate amino acid sequence of GmMADS4 protein; Lowercase letters represent different secondary structures, where h stands for α helix, c for random coil, e for extended strand, and t for β turn |
为了预测GmMADS4基因的功能,本研究将GmMADS4蛋白序列与已报道的模式植物拟南芥和水稻MADS家族成员,以及大豆MADS家族其他成员进行了系统进化树分析。这些MADS成员大致可以分成2个亚家族,分别为亚家族I和亚家族II (图3)。I型MADS成员包括已报道的拟南芥的AtAGL23/62和水稻的OsMADS78/79;GmMADS4属于II型MADS成员,该类型的MADS成员还包括拟南芥的AtAP1、AtAG、AtSOC1、AtANR1、AtP1、AtAP3、AtAGL12/14/15/16/17/18/21,水稻的OsMADS20/23/25/26/27/62,大豆的GmNMHC5、GmNMH7、GmSEP1以及GmAGL1/11/15,其中GmMADS4与拟南芥的AtAP3序列相似性较高(图3)。

|
图 3 MADS家族蛋白系统进化树分析 Fig. 3 Phylogenetic tree analysis of MADS family proteins |
取GmMADS4基因5'UTR上游2 000 bp的序列为启动子,分析其中的顺式调控元件,结果表明,在GmMADS4基因启动子中含有多种类型的顺式调控元件。其中最多的是典型的光响应元件,有22个,包括9个Box 4、5个G-Box、3个GT1-motif、2个TCCC-motif、2个AE-box和1个LAMP-element元件。其次是植物激素响应相关的元件,有9个,其中响应茉莉酸甲酯的有4个,包括2个CGTCA-motif和2个TGACG-motif;还有4个脱落酸响应元件ABBRE和1个赤霉素响应元件P-box。除了光响应和激素响应元件外,还包括胚乳表达相关元件GCN4_motif、分生组织表达相关元件CAT-box等参与生长发育调控的元件,厌氧感应元件ARE,以及MYB和MYC转录因子介导的多种逆境胁迫响应元件。
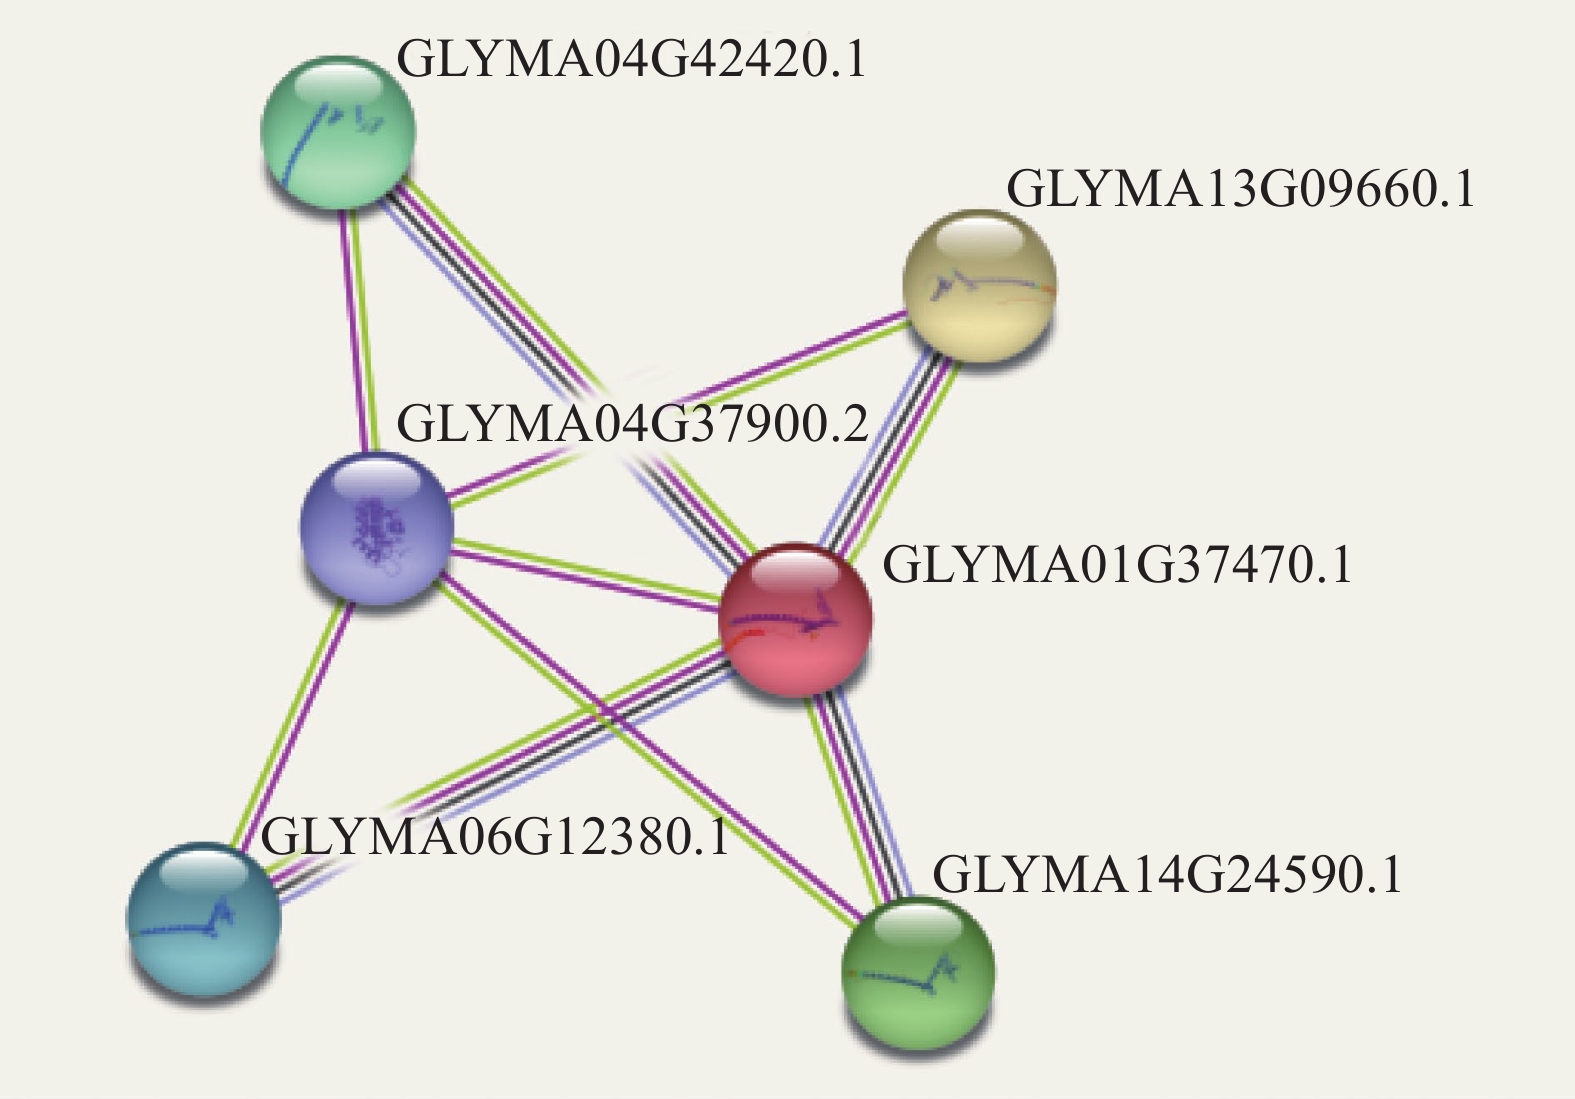
2.5 GmMADS4互作蛋白预测通过STRING网站对GmMADS4的互作蛋白进行了预测,结果发现,有5个候选蛋白可能与GmMADS4 (GLYMA01G37470.1)存在互作关系(图4)。其中,GmMADS8 (GLYMA13G09660.1)、GmMADS9 (GLYMA14G24590.1)、GmMADS10 (GLYMA04G42420.1)、GmMADS7 (GLYMA06G12380.1)为MADS家族蛋白,GmLFY1 (GLYMA04G37900.2)为LEAFY家族蛋白。
|
图 4 GmMADS4互作蛋白预测 Fig. 4 Interaction protein prediction of GmMADS4 不同颜色的圆球表示不同的蛋白,其中红色为GmMADS4;直线相连的2个蛋白预测存在相互作用 Different colored spheres indicate different proteins, red is GmMADS4; Two proteins connected in a straight line are predicted to have an interaction |
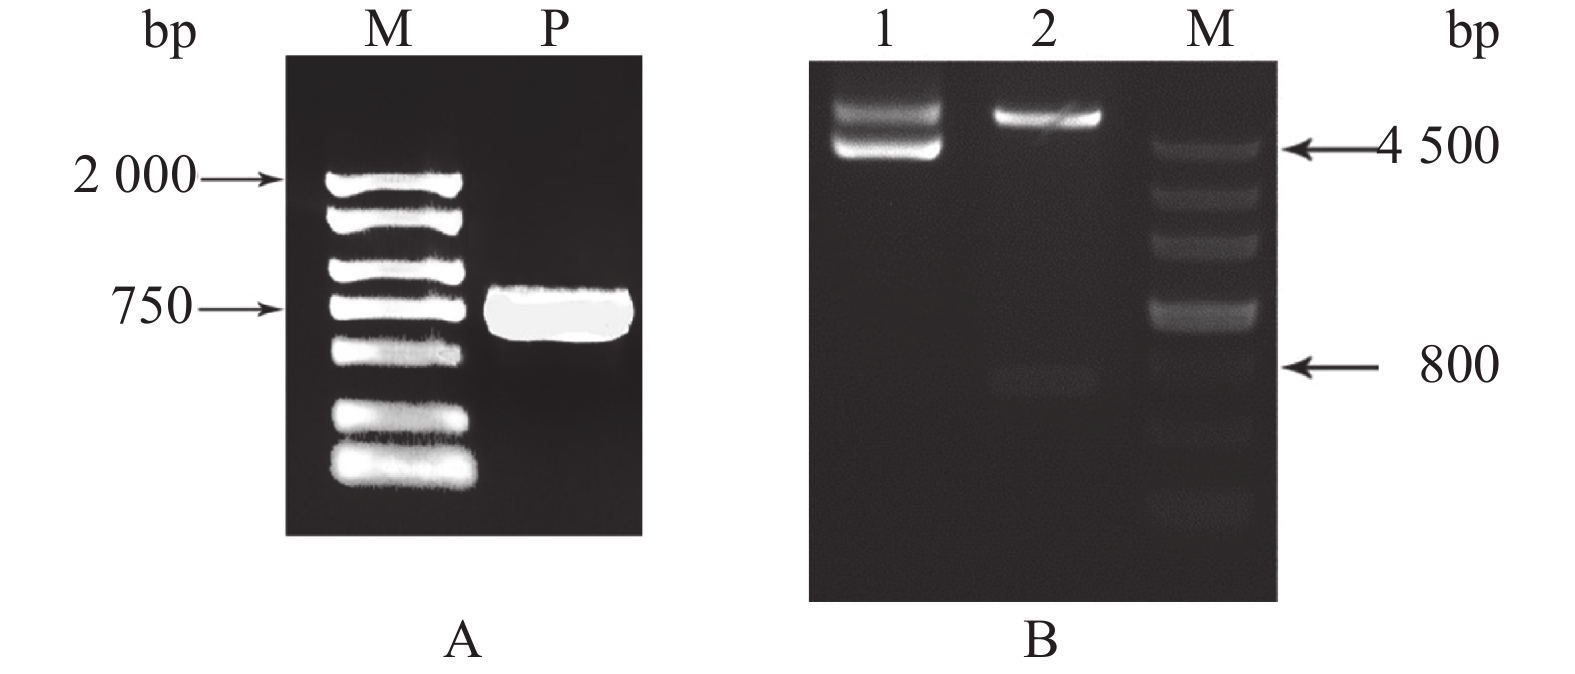
为了分析GmMADS4基因功能,本研究用特异性引物OE-GmMADS4-F/R 通过PCR克隆了GmMADS4基因ORF全长,结果如图5A所示;PCR扩增获得1条单独的条带,位置在750 bp左右,与GmMADS4基因ORF全长732 bp大小一致。经测序无碱基突变后,进一步连接到超量表达载体pTF101s上。图5B为GmMADS4-pTF101s重组质粒酶切检测,与重组质粒酶切前(泳道1)相比,经Sac I和Xba I限制性内切酶双酶切后(泳道2)在略低于800 bp的位置出现了1个条带,大小与GmMADS4基因ORF全长一致,说明重组质粒构建成功。
|
图 5 GmMADS4基因克隆及酶切检测 Fig. 5 Cloning and enzyme digestion of GmMADS4 A:GmMADS4基因PCR扩增,B:GmMADS4-pTF101s重组质粒酶切检测;M代表DNA marker,P代表PCR产物,泳道1为重组质粒酶切前,泳道2为重组质粒酶切后 A: PCR amplification of GmMADS4 gene, B: Digestion verification of GmMADS4-pTF101s recombinant plasmid; M represents DNA marker, P represents PCR product, lane 1 is the recombinant plasmid before digestion, lane 2 is the recombinant plasmid after digestion |
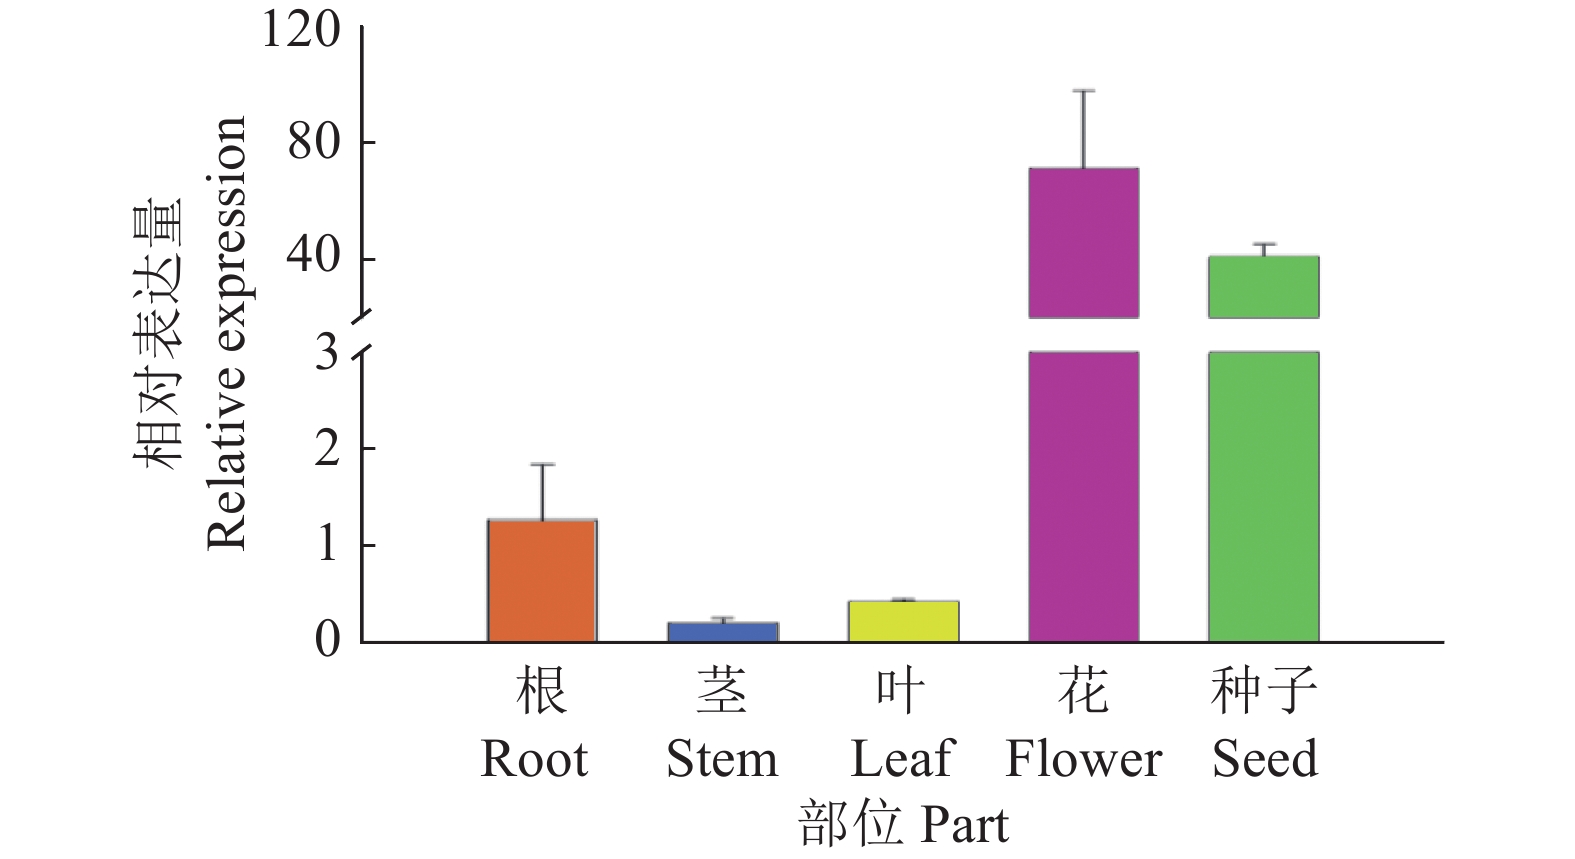
为了分析GmMADS4基因主要在大豆哪个部位发挥功能,本研究通过RT-qPCR分析了该基因在大豆根、茎、叶、花和种子中的表达量(图6)。在大豆根、茎、叶、花和种子中都能检测到GmMADS4基因的表达;值得注意的是,GmMADS4主要在花和种子中有较高的表达量,尤其在花中的表达量最高,而在根、茎和叶中表达量相对较低,尤其在茎中表达量最低(图6)。GmMADS4基因在花中的表达量约是种子中的1.7倍,同时约是根、茎和叶中表达量的50倍以上。
|
图 6 GmMADS4在大豆不同部位的表达分析 Fig. 6 Expression pattern analysis of GmMADS4 in different soybean organs |
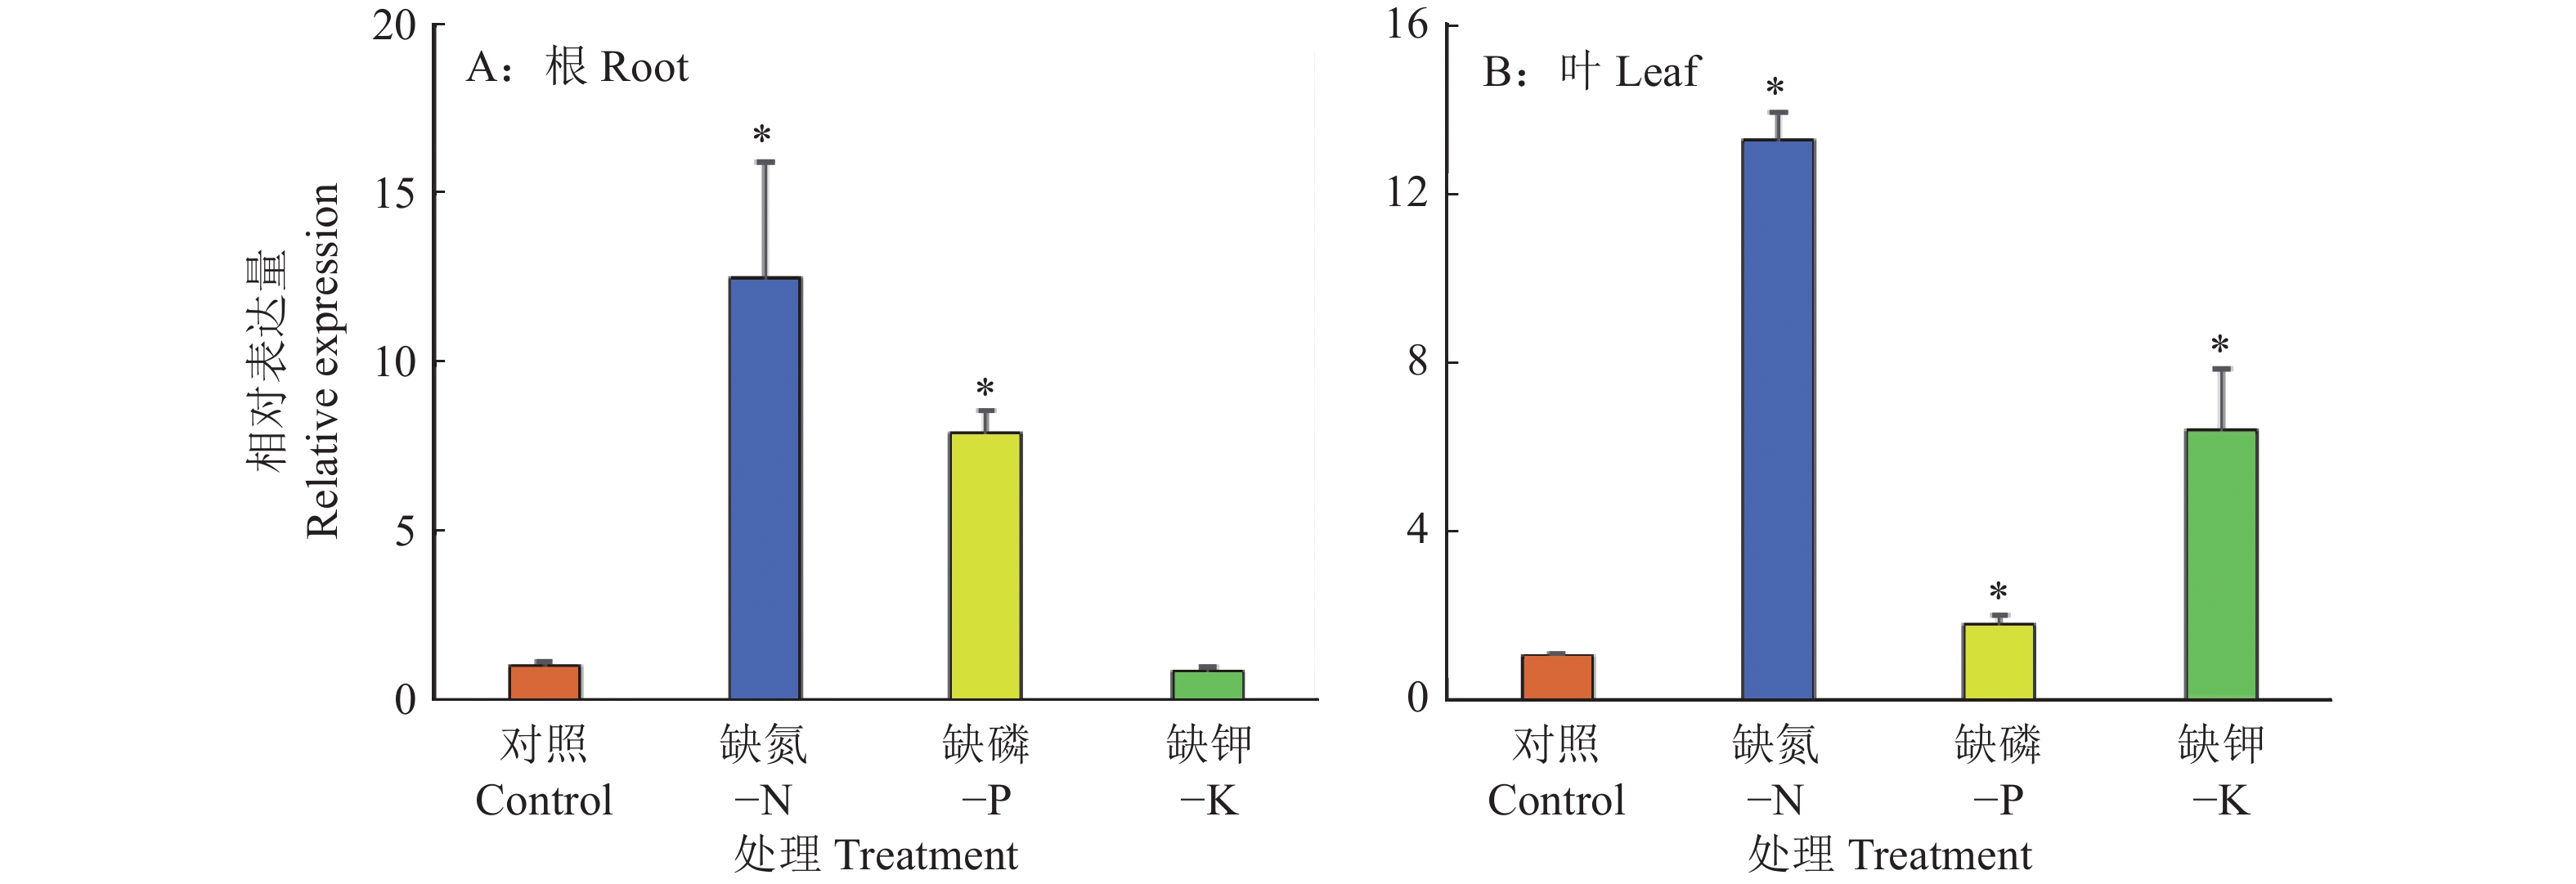
进一步分析了GmMADS4基因对缺氮、缺磷、缺钾胁迫的响应,结果表明GmMADS4在大豆叶和根中响应多种非生物胁迫(图7)。GmMADS4在大豆根中主要受缺氮和缺磷处理上调表达,而对于缺钾处理没有响应;与正常处理的对照组相比,GmMADS4在缺氮和缺磷处理下的表达量分别提高了11.2和6.6倍(图7A)。在大豆叶部,缺氮、缺磷和缺钾处理均上调GmMADS4的表达;与正常处理的对照组相比,GmMADS4在缺氮、缺磷和缺钾处理叶中的表达分别提高了12.0、0.7和5.2倍(图7B)。
|
图 7 GmMADS4在大豆根和叶中响应缺素的表达模式分析 Fig. 7 Expression pattern analysis of GmMADS4 in response to element deficiency in soybean roots and leaves “*”表示缺素处理与对照相比差异显著(P < 0.05,t检验) “*” indicates significant difference between element deficiency treatment and control (P < 0.05, t test) |
为了研究GmMADS4蛋白在亚细胞水平的具体定位,本研究通过烟草叶部瞬时转化,将携带GmMADS4融合GFP (GmMADS4-GFP)的农杆菌GV3101转化烟草叶片,通过激光共聚焦显微镜观察荧光位置,其中以GFP空载体为对照。转化GFP空载体的叶片在细胞核、细胞质、细胞膜都有较强的绿色荧光,而转化GmMADS4的叶片主要在细胞核有较强绿色荧光,此外在细胞膜也有微弱的绿色荧光(图8)。这些结果表明GmMADS4主要定位在细胞核。

|
图 8 GmMADS4亚细胞定位分析 Fig. 8 Subcellular localization analysis of GmMADS4 |
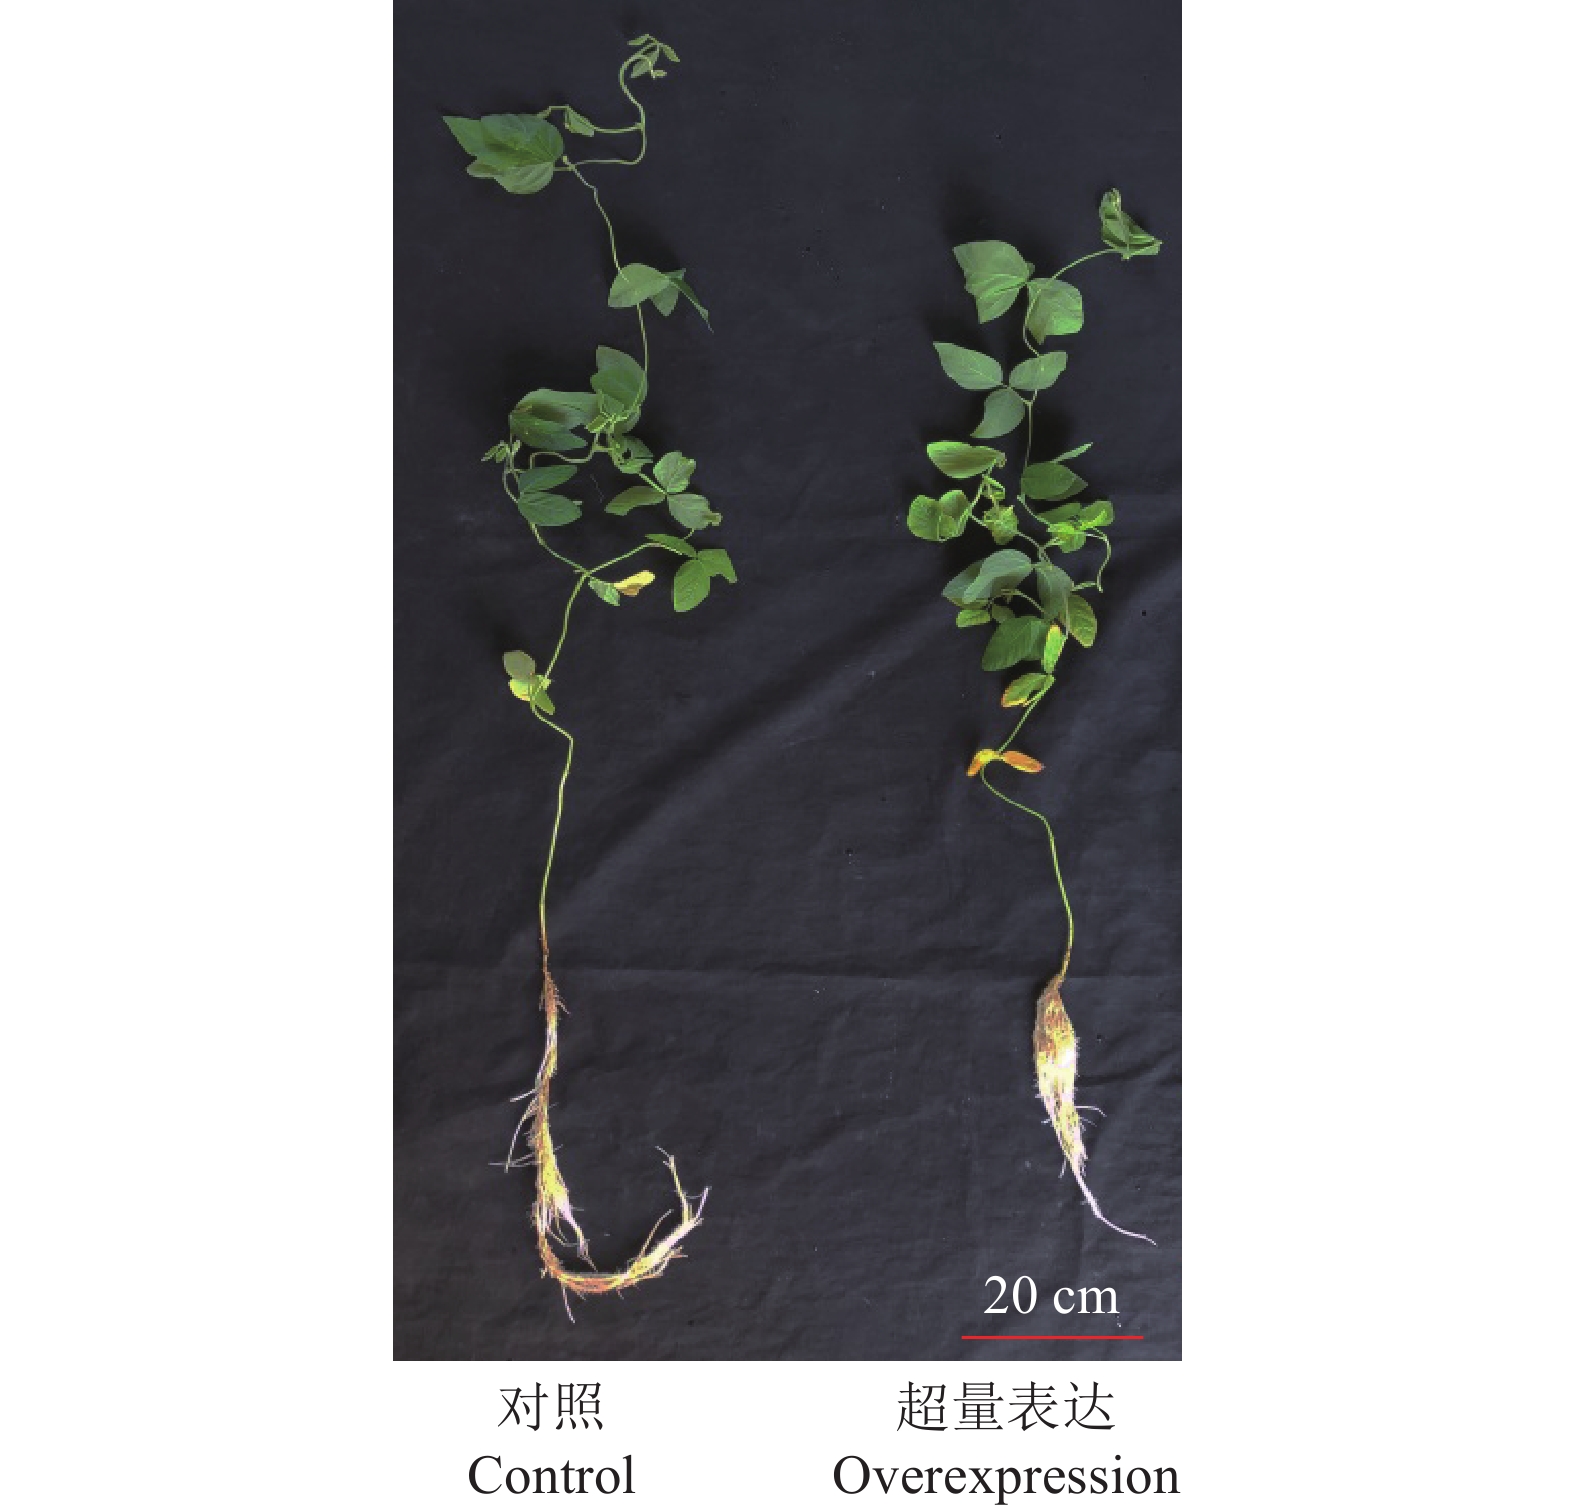
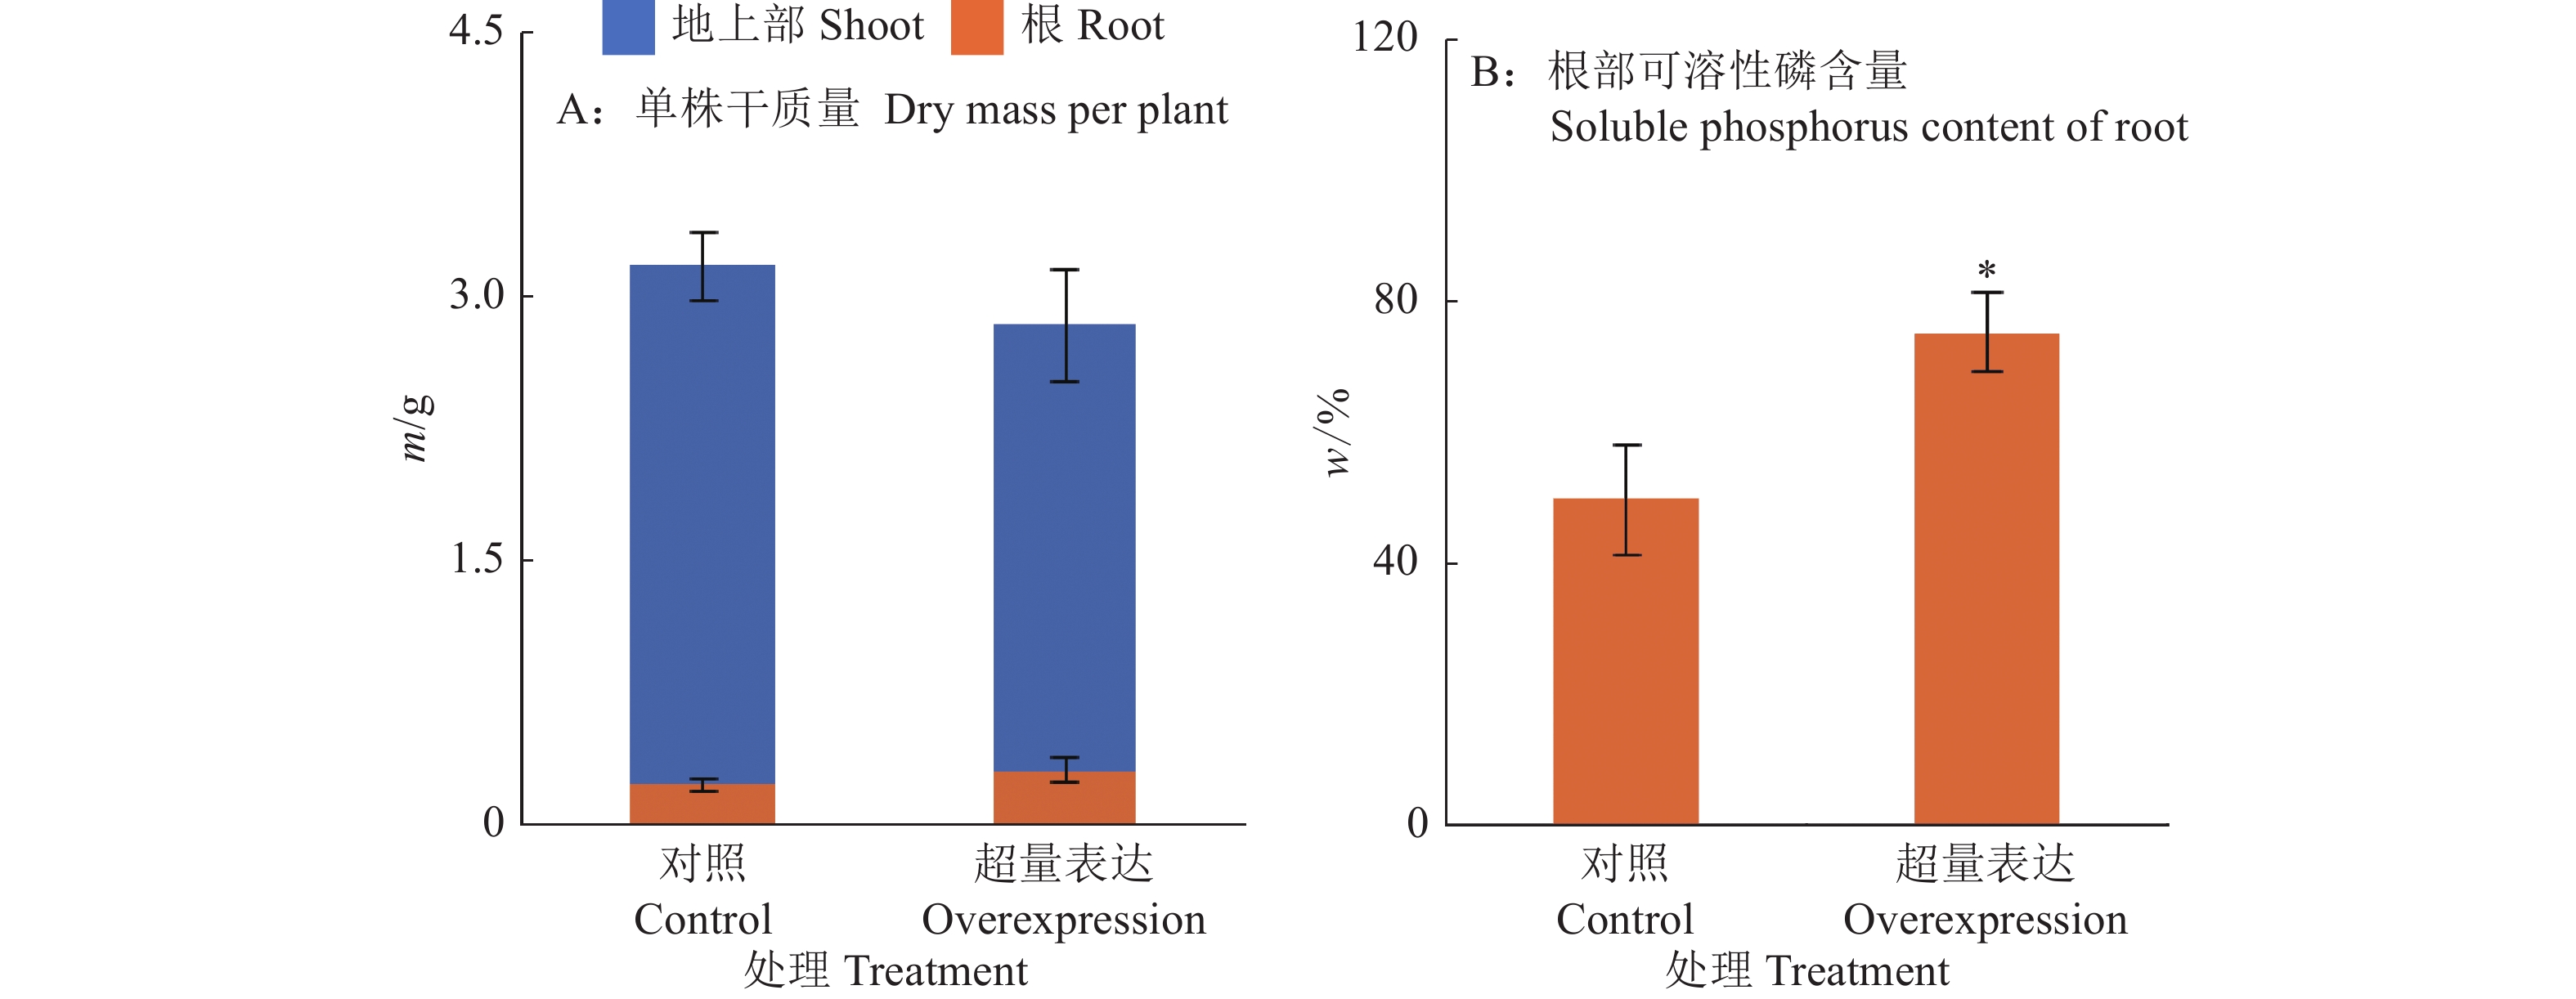
为了研究GmMADS4基因的功能,本研究进一步利用发根农杆菌K599,通过下胚轴复合植株转化法,获得超量表达GmMADS4的大豆转基因复合植株,即根系为转基因毛根、地上部位正常的大豆植株。将超量表达株系与转化空载体的对照株系在大豆营养液中培养14 d,观察表型。与对照相比,超量表达GmMADS4有促进毛根生长、减缓地上部生长的趋势,但是从毛根、地上部以及整株干质量上看差异均不明显(图9)。超量表达GmMADS4虽然没有改变复合植株的生物量(图10A),但是显著增加了毛根的可溶性磷含量(图10B),与对照相比,超量表达GmMADS4转基因复合植株毛根中的可溶性磷含量显著增加51% (图10B)。
|
图 9 超量表达GmMADS4转基因复合植株的生长表型 Fig. 9 Growth phenotypes of overexpressing GmMADS4 transgenic composite plants |
|
图 10 超量表达GmMADS4对大豆复合植株生物量和可溶性磷含量的影响 Fig. 10 Effects of overexpressing GmMADS4 on biomass and soluble phosphorus content of soybean composite plants “*”表示对照和超量表达处理差异显著(P < 0.05,t检验) “*” indicates significant difference between control and overexpression treatment (P < 0.05, t test) |
MADS转录因子家族在植物多个生长发育过程中发挥重要的调控作用。本研究克隆了大豆II型MADS成员——GmMADS4,从进化关系上,GmMADS4与拟南芥MADS家族成员AP3的序列相似性最高。AP3属于经典的ABC模型中的B型基因,在花器官识别中扮演重要角色[23-24],同时,不同部位表达模式分析表明GmMADS4基因在大豆花中表达量最高,暗示GmMADS4可能在花器官形成和发育中发挥重要作用。在拟南芥花分生组织发育的调控过程中,拟南芥MADS成员SEP3与AG、AP3和PI均存在明显互作,以异源二聚体的形式发挥功能[25]。本研究通过互作蛋白预测发现GmMADS4与其他4个MADS成员GmMADS7/8/9/10存在相互作用,表明GmMADS4可能以复合体的形式参与调控作用。虽然关于大豆GmMADS7/8/9/10的具体功能还未见报道,但表达模式分析表明GmMADS7/8/9/10这4个成员均主要在花中特异表达[17]。这些结果表明,GmMADS4可能与其他蛋白互作,以异源二聚体的形式调控花器官的形成和发育。除了在花中高表达,GmMADS4在大豆种子中也有较高的表达量,且GmMADS4启动子中含有胚乳表达相关元件GCN4_motif,暗示GmMADS4还参与大豆种子发育。互作蛋白预测发现GmMADS4与GmLFY1也存在互作,GmLFY1被报道主要在发育中的豆荚和种子中表达,而在茎尖分生组织中不表达,可能参与大豆的种子发育而不是开花[26]。这些结果表明,GmMADS4可能在大豆种子发育调控中也发挥重要功能。
MADS转录因子已被报道参与植物多种非生物胁迫,并在调控网络中扮演关键角色[27]。本研究发现,GmMADS4在根和叶中响应缺氮和缺磷胁迫上调表达,同时在叶中也受缺钾胁迫上调表达,暗示GmMADS4可能参与氮、磷或钾元素缺乏胁迫的适应性调控。在拟南芥中,MADS家族成员AtAGL14/19/20/21/44均在根部受缺氮胁迫上调表达,其中,AtAGL20同时还受缺磷胁迫上调表达[28-29]。超量表达AtAGL44 (也即AtANR1)能够促进拟南芥根系发育,增加侧根数目和长度,且这种调控方式依赖于硝酸根离子的存在[30]。水稻OsMADS61在根部受缺氮胁迫上调表达[12],相反,OsMADS27/57在根部受缺氮胁迫下调表达[12, 31]。其中,OsMADS57已被证明通过直接调控OsNRT2.3a的表达,进而调控水稻中硝酸根离子从根往地上部的长距离运输[32]。此外,在水稻中多个MADS基因在根部受缺磷胁迫下调表达,如OsMADS23/25/27/57[12, 31]。除了拟南芥和水稻,在小麦180个MADS成员中有54个MADS基因的表达在根部响应缺磷,其中TaMADS21/93/121这3个成员受缺磷胁迫上调表达超过4倍[33]。但是,关于MADS基因参与磷信号调控功能的报道较少。本研究发现,在大豆毛根中超量表达GmMADS4能够增加毛根中可溶性磷的含量,暗示GmMADS4可能参与调控大豆根系磷稳态。
综上所述,大豆GmMADS4在花和种子中高表达,可能通过与其他转录因子互作参与调控花和种子发育。另一方面,低磷胁迫上调GmMADS4在根系中的表达,且超量表达GmMADS4增加了转基因毛根的可溶性磷含量。因此,GmMADS4可能在大豆耐低磷胁迫中发挥重要调节作用。
| [1] |
ALVAREZ-BUYLLA E R, PELAZ S, LILJEGREN S J, et al. An ancestral MADS-box gene duplication occurred before the divergence of plants and animals[J]. Proceedings of the National Academy of Sciences of the United States of America, 2000, 97(10): 5328-5333. DOI:10.1073/pnas.97.10.5328 (  0) |
| [2] |
BECKER A, THEISSEN G. The major clades of MADS-box genes and their role in the development and evolution of flowering plants[J]. Molecular Phylogenetics and Evolution, 2003, 29(3): 464-489. DOI:10.1016/S1055-7903(03)00207-0 ( 0) |
| [3] |
王莹, 穆艳霞, 王锦. MADS-box基因家族调控植物花器官发育研究进展
[J]. 浙江农业学报, 2021, 33(6): 1149-1158. ( 0) |
| [4] |
PAUL P, DHATT B K, MILLER M, et al. MADS78 and MADS79 are essential regulators of early seed development in rice
[J]. Plant Physiology, 2020, 182(2): 933-948. DOI:10.1104/pp.19.00917 ( 0) |
| [5] |
KANG I H, STEFFEN J G, PORTEREIKO M F, et al. The AGL62 MADS domain protein regulates cellularization during endosperm development in Arabidopsis
[J]. The Plant Cell, 2008, 20(3): 635-647. DOI:10.1105/tpc.107.055137 ( 0) |
| [6] |
ZHANG G, XU N, CHEN H, et al. OsMADS25 regulates root system development via auxin signalling in rice
[J]. The Plant Journal, 2018, 95(6): 1004-1022. DOI:10.1111/tpj.14007 ( 0) |
| [7] |
MA W Y, LIU W, HOU W S, et al. GmNMH7, a MADS-box transcription factor, inhibits root development and nodulation of soybean (Glycine max [L.] Merr.)
[J]. Journal of Integrative Agriculture, 2019, 18(3): 553-562. DOI:10.1016/S2095-3119(18)61992-6 ( 0) |
| [8] |
姚琦园, 李纷芬, 张林成, 等. 植物MADS-box转录因子参与调控非生物胁迫的研究进展[J]. 江西农业学报, 2018, 30(5): 73-79. DOI:10.19386/j.cnki.jxnyxb.2018.05.15 ( 0) |
| [9] |
ZHAO P X, ZHANG J, CHEN S Y, et al. Arabidopsis MADS-box factor AGL16 is a negative regulator of plant response to salt stress by downregulating salt-responsive genes[J]. New Phytologist, 2021, 232(6): 2418-2439. DOI:10.1111/nph.17760 ( 0) |
| [10] |
闫凌月, 张豪健, 郑雨晴, 等. 转录因子OsMADS25提高水稻对低温的耐受性[J]. 遗传, 2021, 43(11): 1078-1087. DOI:10.16288/j.yczz.21-217 ( 0) |
| [11] |
ZHANG X, LI L, YANG C, et al. GsMAS1 encoding a MADS-box transcription factor enhances the tolerance to aluminum stress in Arabidopsis thaliana
[J]. International Journal of Molecular Sciences, 2020, 21(6): 2004. DOI:10.3390/ijms21062004 ( 0) |
| [12] |
YU C, SU S, XU Y, et al. The effects of fluctuations in the nutrient supply on the expression of five members of the AGL17 clade of MADS-box genes in rice
[J]. PLoS One, 2014, 9(8): e105597. DOI:10.1371/journal.pone.0105597 ( 0) |
| [13] |
曹永强, 王昌陵, 王文斌, 等. 国内外大豆产业、科技现状浅析与我国大豆产业发展思考[J]. 辽宁农业科学, 2019(6): 44-48. DOI:10.3969/j.issn.1002-1728.2019.06.011 ( 0) |
| [14] |
田江, 梁翠月, 陆星, 等. 根系分泌物调控植物适应低磷胁迫的机制[J]. 华南农业大学学报, 2019, 40(5): 175-185. DOI:10.7671/j.issn.1001-411X.201905068 ( 0) |
| [15] |
李欣欣, 杨永庆, 钟永嘉, 等. 豆科作物适应酸性土壤的养分高效根系遗传改良[J]. 华南农业大学学报, 2019, 40(5): 186-194. DOI:10.7671/j.issn.1001-411X.201905067 ( 0) |
| [16] |
刘国选, 陈康, 陆星, 等. 大豆GmPIN2b调控根系响应低磷胁迫的功能研究
[J]. 华南农业大学学报, 2021, 42(4): 33-41. DOI:10.7671/j.issn.1001-411X.202010014 ( 0) |
| [17] |
FAN C M, WANG X, WANG Y W, et al. Genome-wide expression analysis of soybean MADS genes showing potential function in the seed development[J]. PLoS One, 2013, 8(4): e62288. DOI:10.1371/journal.pone.0062288 ( 0) |
| [18] |
YAO Z, TIAN J, LIAO H. Comparative characterization of GmSPX members reveals that GmSPX3 is involved in phosphate homeostasis in soybean
[J]. Annals of Botany, 2014, 114(3): 477-488. DOI:10.1093/aob/mcu147 ( 0) |
| [19] |
ZHU S, CHEN M, LIANG C, et al. Characterization of purple acid phosphatase family and functional analysis of GmPAP7a/7b involved in extracellular ATP utilization in soybean
[J]. Frontiers in Plant Science, 2020, 11: 661. DOI:10.3389/fpls.2020.00661 ( 0) |
| [20] |
LIU Y, XUE Y, XIE B, et al. Complex gene regulation between young and old soybean leaves in responses to manganese toxicity[J]. Plant Physiology and Biochemistry, 2020, 155: 231-242. DOI:10.1016/j.plaphy.2020.07.002 ( 0) |
| [21] |
ZHUANG Q, XUE Y, YAO Z, et al. Phosphate starvation responsive GmSPX5 mediates nodule growth through interaction with GmNF-YC4 in soybean (Glycine max)
[J]. The Plant Journal, 2021, 108(5): 1422-1438. DOI:10.1111/tpj.15520 ( 0) |
| [22] |
MURPHY J, RILEY J P. A modifed single solution method for the determination of phosphate in natural water[J]. Analytica Chimica Acta, 1962, 27: 31-36. DOI:10.1016/S0003-2670(00)88444-5 ( 0) |
| [23] |
JACK T, BROCKMAN L L, MEYEROWITZ E M. The homeotic gene APETALA3 of Arabidopsis thaliana encodes a MADS box and is expressed in petals and stamens
[J]. Cell, 1992, 68(4): 683-697. DOI:10.1016/0092-8674(92)90144-2 ( 0) |
| [24] |
PAR̆ENICOVÁ L, DE FOLTER S, KIEFFER M, et al. Molecular and phylogenetic analyses of the complete MADS-box transcription factor family in Arabidopsis
[J]. The Plant Cell, 2003, 15(7): 1538-1551. DOI:10.1105/tpc.011544 ( 0) |
| [25] |
SMACZNIAK C, IMMINK R G, MUINO J M, et al. Characterization of MADS-domain transcription factor complexes in Arabidopsis flower development
[J]. Proceedings of the National Academy of Sciences of the United States of America, 2012, 109(5): 1560-1565. DOI:10.1073/pnas.1112871109 ( 0) |
| [26] |
NAN H, CAO D, ZHANG D, et al. GmFT2a and GmFT5a redundantly and differentially regulate flowering through interaction with and upregulation of the bZIP transcription factor GmFDL19 in soybean
[J]. PLoS One, 2014, 9(5): e97669. DOI:10.1371/journal.pone.0097669 ( 0) |
| [27] |
CASTELAN-MUNOZ N, HERRERA J, CAJERO-SANCHEZ W, et al. MADS-box genes are key components of genetic regulatory networks involved in abiotic stress and plastic developmental responses in plants[J]. Frontiers in Plant Science, 2019, 10: 853. DOI:10.3389/fpls.2019.00853 ( 0) |
| [28] |
GAN Y, FILLEUR S, RAHMAN A, et al. Nutritional regulation of ANR1 and other root-expressed MADS-box genes in Arabidopsis thaliana
[J]. Planta, 2005, 222(4): 730-742. DOI:10.1007/s00425-005-0020-3 ( 0) |
| [29] |
GAN Y B, ZHOU Z J, AN L J, et al. A comparison between northern blotting and quantitative real-time PCR as a means of detecting the nutritional regulation of genes expressed in roots of Arabidopsis thaliana
[J]. Agricultural Sciences in China, 2011, 10(3): 335-342. DOI:10.1016/S1671-2927(11)60012-6 ( 0) |
| [30] |
GAN Y, BERNREITER A, FILLEUR S, et al. Overexpressing the ANR1 MADS-box gene in transgenic plants provides new insights into its role in the nitrate regulation of root development
[J]. Plant and Cell Physiology, 2012, 53(6): 1003-1016. DOI:10.1093/pcp/pcs050 ( 0) |
| [31] |
YAN Y, WANG H, HAMERA S, et al. MiR444a has multiple functions in the rice nitrate-signaling pathway[J]. The Plant Journal, 2014, 78(1): 44-55. DOI:10.1111/tpj.12446 ( 0) |
| [32] |
HUANG S, LIANG Z, CHEN S, et al. A transcription factor, OsMADS57, regulates long-distance nitrate transport and root elongation[J]. Plant Physiology, 2019, 180(2): 882-895. DOI:10.1104/pp.19.00142 ( 0) |
| [33] |
MA J, YANG Y, LUO W, et al. Genome-wide identification and analysis of the MADS-box gene family in bread wheat (Triticum aestivum L.)
[J]. PLoS One, 2017, 12(7): e0181443. DOI:10.1371/journal.pone.0181443 ( 0) |